

Ochrana přírody 5/2026 — 29. 10. 2026 — Péče o přírodu a krajinu — Tištěná verze článku v pdf
Genetická struktura běžných lučních druhů jako podklad pro tvorbu osevních směsí
Louky a travní porosty ve střední Evropě i v ČR postupně přicházejí o druhovou rozmanitost a tím ztrácejí i funkční diverzitu neboli rozmanitost ekologických vlastností druhů (například Wesche a kol. 2012, Klinkovská a kol. 2023). Pro fungování travních společenstev je přitom důležitá nejen diverzita rostlin, ale i na ni navázaný celý systém vztahů ostatních organismů od mikroorganismů a hmyzu až po ptáky a savce.
Existuje tak snaha jejich druhovou diverzitu opět zvyšovat a tím zvyšovat i celkovou stabilitu těchto společenstev. Travní porosty se také obnovují nebo i nově zakládají například na orné půdě nebo v urbanizovaných územích. Pro tyto účely se obvykle používají osevní směsi, často komerčně produkované, jejichž využití ale může mít různá úskalí.
Problémy používání semenných směsí
Vedle samotné druhové skladby je také velmi důležitá (a méně viditelná) genetická struktura lučních druhů, která odráží jejich historické rozšíření, prostorovou izolaci a přirozené populační hranice. Rostlinám adaptovaným na lokální podmínky se často daří lépe než rostlinám pocházejícím z větší vzdálenosti, a tak jsou jejich populace dlouhodobě stabilnější (Durka a kol. 2017, Forgione a kol. 2026). Osivo pocházející z oblastí mimo daný region navíc může mít časem za následek genetické „naředění“ místních populací a tím redukci jejich životaschopnosti. Komerční semenné směsi jsou ale obvykle produkovány bez ohledu na tyto regionální genetické vzorce, což může vést k nežádoucímu mísení odlišných genetických linií napříč krajinou. Naopak regionálně cílené směsi založené na znalosti genetické prostorové struktury respektují existující populační diferenciaci a minimalizují riziko potenciálně problematického genetického ovlivnění místních populací.
Regionalita osevních směsí a genetická diverzita
V současnosti v ČR není vysévání běžných původních lučních druhů v běžné krajině nijak regulováno, omezení se týkají jen chráněných území. Používání regionálního osiva je sice doporučováno Českým svazem ochránců přírody (ČSOP) a Agenturou ochrany přírody a krajiny ČR (AOPK) v rámci Standardu péče o přírodu a krajinu (AOPK ČR SPPK D02 001: 2017), ale je vyžadováno jen v případě využití veřejných financí. Tento současný systém zdrojů osiva počítá se čtyřmi regiony definovanými na základě biogeografických kritérií, tedy převážně na podobnosti abiotických a historických faktorů (Ševčíková a kol. 2017, Obr. 2). Na menším prostorovém měřítku díky lokálním iniciativám existují nebo vznikají regionální osevní směsi (např. Bílé Karpaty, Žďárské vrchy, Beskydy, Šumava, Praha a další). Ty díky tomu, že jejich zdrojové a cílové oblasti jsou relativně malého rozsahu, a navíc se navzájem téměř překrývají, minimalizují potenciální problémy s nevhodnou genetickou skladbou. Ani ty ale neberou v potaz reálná data o genetické struktuře v nich obsažených druhů, a tím pádem není známo, jaký je limitující rozsah vhodného zdrojového území. Lokální směsi jsou produkovány převážně manuálně a v malých objemech, což je finančně náročné.
Pro další praktickou práci při obnově druhově bohatých trávníků je třeba tuto dichotomii překlenout, tj. najít vhodná prostorová měřítka, v nichž je možné přenášet osivo jednotlivých druhů bez rizika jejich genetické eroze. Ta budou pravděpodobně větší, než je velikost oblastí, v nichž jsou dnes vytvářené regionální směsi, ale rozhodně menší, než je celá ČR. Velkou otázkou samozřejmě je, do jaké míry budou korespondovat s existujícími čtyřmi regiony zmíněnými výše. Právě tyto otázky vyřeší poznání genetické variability běžných lučních druhů pro celou ČR, které umožní stanovení vhodných zdrojových regionů pro osevní směsi.
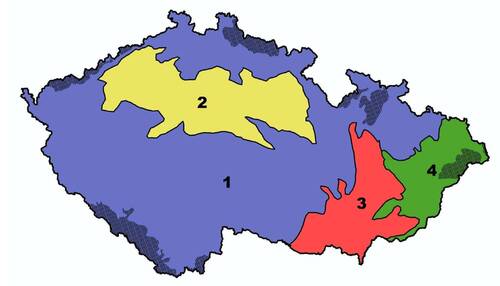
Obr. 2: V současnosti používané regiony pro zdroje osevních směsí podle Standardu péče o přírodu a krajinu AOPK ČR. Vyznačené regiony: 1 – Pohoří Českého masivu a jejich podhůří, 2 – Polabí a přilehlé teplé pahorkatiny, 3 – Panonská nížina a přilehlé teplé pahorkatiny, 4 – Karpatská pohoří a jejich podhůří. Horské oblasti šrafovaně. Převzato ze Standardu péče o přírodu a krajinu SPPK D02 001: 2017 (Ševčíková a kol. 2017), AOPK ČR.
Jak se studuje genetická diverzita?
V návaznosti na německý projekt RegioDiv (Skálová a kol. 2025, Živa 2/2025) a ve spolupráci s jeho řešiteli se autoři článku zaměřili na 14 druhů (případně souborných druhů) běžných lučních bylin vyskytujících se téměř plošně po celé ČR (řebříček obecný – Achillea millefolium agg., zvonek rozkladitý – Campanula patula, zvonek okrouhlolistý – Campanula rotundifolia agg., chrpa luční – Centaurea jacea, svízel povázka – Galium mollugo agg., chrastavec rolní – Knautia arvensis agg., hrachor luční – Lathyrus pratensis, máchelka srstnatá – Leontodon hispidus, kopretina bílá – Leucanthemum vulgare agg., kohoutek luční – Lychnis flos-cuculi, černohlávek obecný – Prunella vulgaris, pryskyřník prudký – Ranunculus acris, krvavec toten – Sanguisorba officinalis, vikev ptačí – Vicia cracca; výběr viz Obr. 1). Aby bylo docíleno dostatečně hustého a rovnoměrného pokrytí celého území odebranými vzorky, byla oslovena širší botanická veřejnost a také Český svaz ochránců přírody, který spravuje mnoho potenciálně zájmových lokalit (https://louky.cz/lokality). Spolu s dodatečným cíleným sběrem v hůře pokrytých regionech bylo spolu s 66 dobrovolníky navštíveno 398 lokalit a odebráno celkem 10 200 vzorků (většinou 5 vzorků na druh/lokalitu).
Sebrané vzorky bylo nutné co nejrychleji vysušit uložením do silikagelu a v laboratoři z nich získat DNA. Následně byla použita v současnosti běžně používaná metoda ddRAD sekvenování, která umožňuje identifikovat podrobné rozdíly v sekvenci DNA mezi jednotlivými rostlinami a populacemi a na základě sdílení těchto rozdílů rozlišit, které si jsou více či méně příbuzné. V některých případech ale bylo nutné nejdříve využít další metodu, a to průtokovou cytometrii. Pomocí této jednoduché a rychlé metody bylo zjištěno celkové množství DNA v jádrech buněk a tím odvozen stupeň ploidie (tzv. cytotyp) dané rostliny, tedy počet sad chromozomů v buňce. Některé ze zkoumaných, respektive souborných druhů jsou totiž známé tím, že mohou zahrnovat více ploidních úrovní (cytotypů lišících se právě počtem chromozomových sad), mnohdy na základě morfologických znaků obtížně odlišitelných. Ukázkovým příkladem je okruh svízele povázky (Galium mollugo agg.), do kterého patří diploidní rostliny označované jako G. mollugo a tetraploidní rostliny, pro které se používá jméno svízel bílý (G. album). Nerozlišování cytotypů při zkoumání geografického uspořádání genetické variability by bylo jako míchání jablek a hrušek, protože cytotypy mohou představovat evolučně nezávislé, jasně definované jednotky odpovídající spíše samostatným druhům. Oproti tomu genetická variabilita zkoumaná na nižší úrovni pomocí ddRAD sekvenování má podobu spíše kontinuálních gradientů. Důležitou výhodou zvoleného postupu je možnost navázat na již proběhlé nebo i případné budoucí projekty a tím výrazně zvýšit prostorový rozsah podkladů pro tvorbu osevních směsí (Obr. 7). Na základě těchto informací je poté možné stanovit vhodné (tj. geneticky navzájem odlišené, ale vnitřně homogenní) regiony jako zdrojové oblasti pro praktickou tvorbu semenných směsí.
Co říkají předběžné výsledky
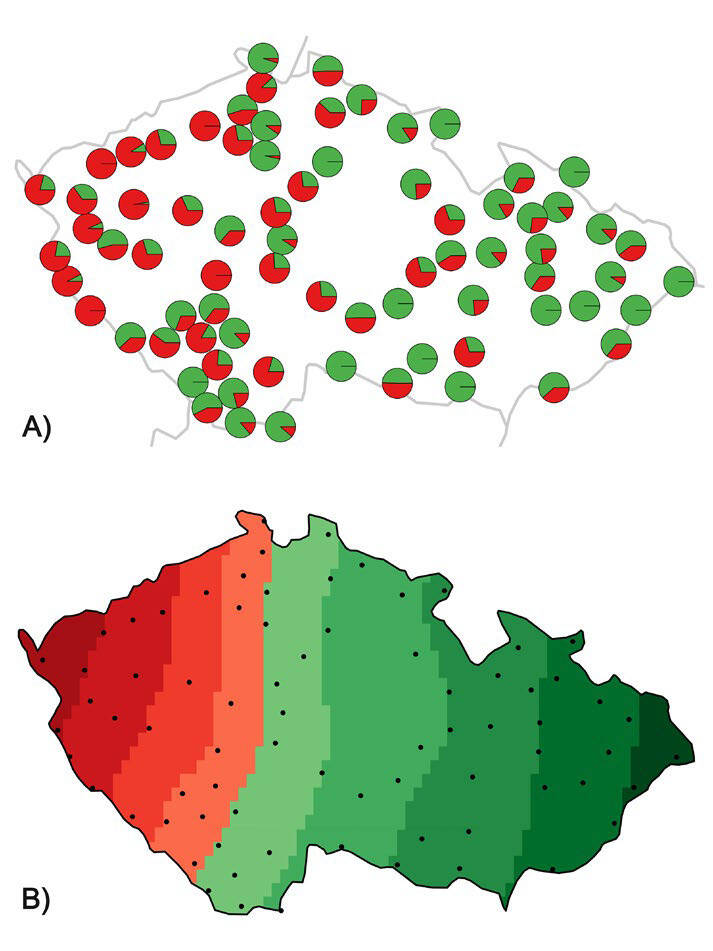
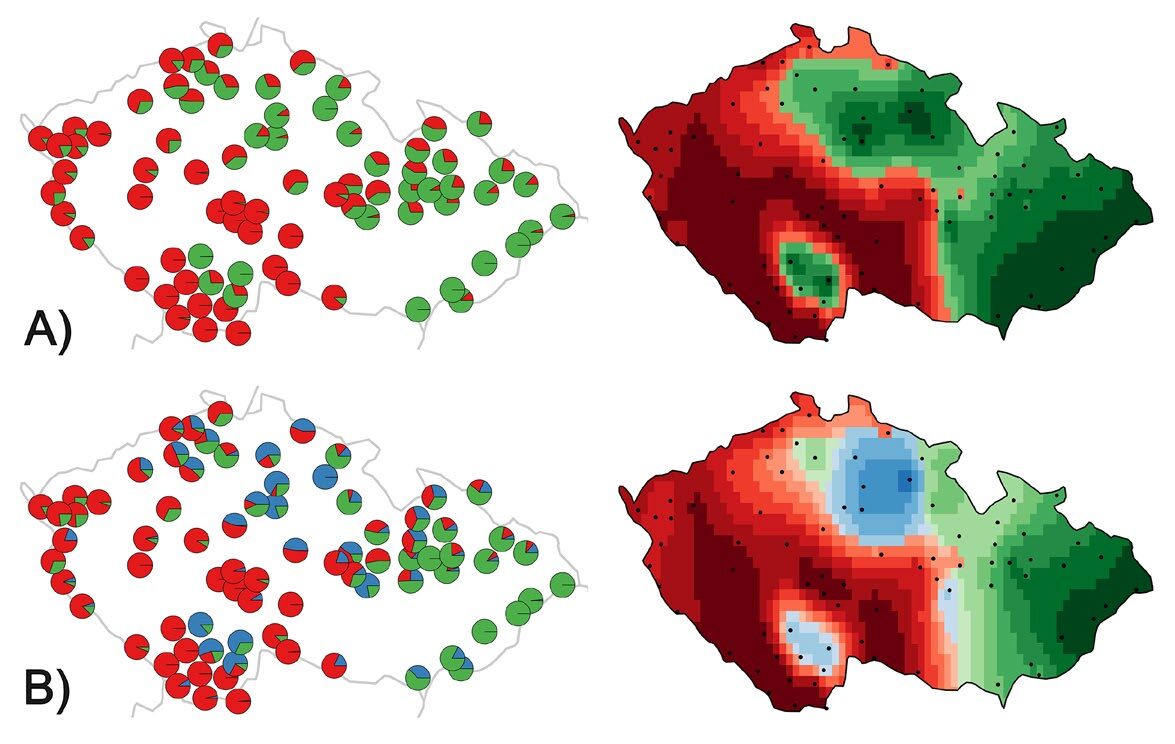
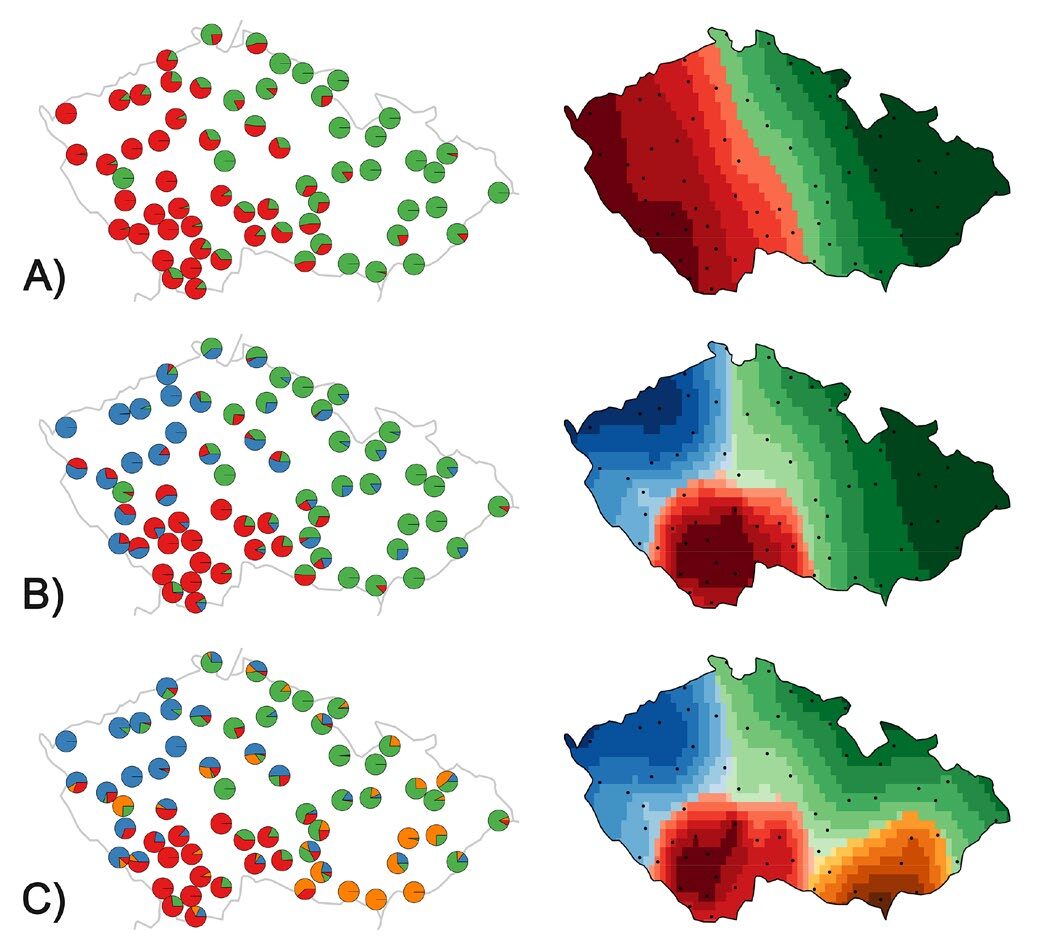
Nyní jsou k dispozici výsledky genetických (ddRADseq) analýz pro 7 druhů a průtokové cytometrie pro 4 známé polyploidní souborné druhy. Geografické rozložení genetické diverzity se sice mezi druhy liší, ale základní schéma se často opakuje. Nejvýraznější je opakující se gradient ve směru západ–východ (Obr. 3–5). Populace z karpatské oblasti na východě se téměř vždy liší od populací ze západních Čech, přechod mezi nimi je ale často postupný, nejasně definovaný a případná hranice mezi nimi se liší i svou geografickou polohou. Například u hrachoru lučního (Obr. 3) a pryskyřníku prudkého (Obr. 4) probíhá přibližně severojižně uprostřed území Čech. Detailnější pohled na hlubší úrovně variability u pryskyřníků dále vyděluje populace z jihu Čech a jihu Moravy. Obdobný celkový gradient, ale složitější strukturu lze nalézt u kohoutku lučního (Obr. 5), kde se ukazuje rozdělení na dva až tři odlišné regionální typy. Ty jsou rámcově orientované také ve směru západ–východ, ale ukazují na specifické populace v jižních a severovýchodních Čechách.
Obr. 3: Mapy genetické variability (zjištěné pomocí ddRAD sekvenování) hrachoru lučního (Lathyrus pratensis) ukazující východo-západní gradient dvou různých typů. Zobrazení stejných výsledků dvěma způsoby – po populacích (A) a pomocí isočar (B).
Obr. 4: Mapa genetické variability (zjištěné pomocí ddRAD sekvenování) pryskyřníku prudkého (Ranunculus acris) ukazující východo-západní gradient dvou různých typů (A) a detailnější regionální struktura při rozdělení na tři (B) a čtyři (C) skupiny.
Obr. 5: Mapa genetické variability (zjištěné pomocí ddRAD sekvenování) kohoutku lučního (Lychnis flos-cuculi) ukazující dva (A) nebo tři (B) regionální typy. Obě možnosti jsou ekvivalentní, ukazují různý způsob rozdělení genetické variability.
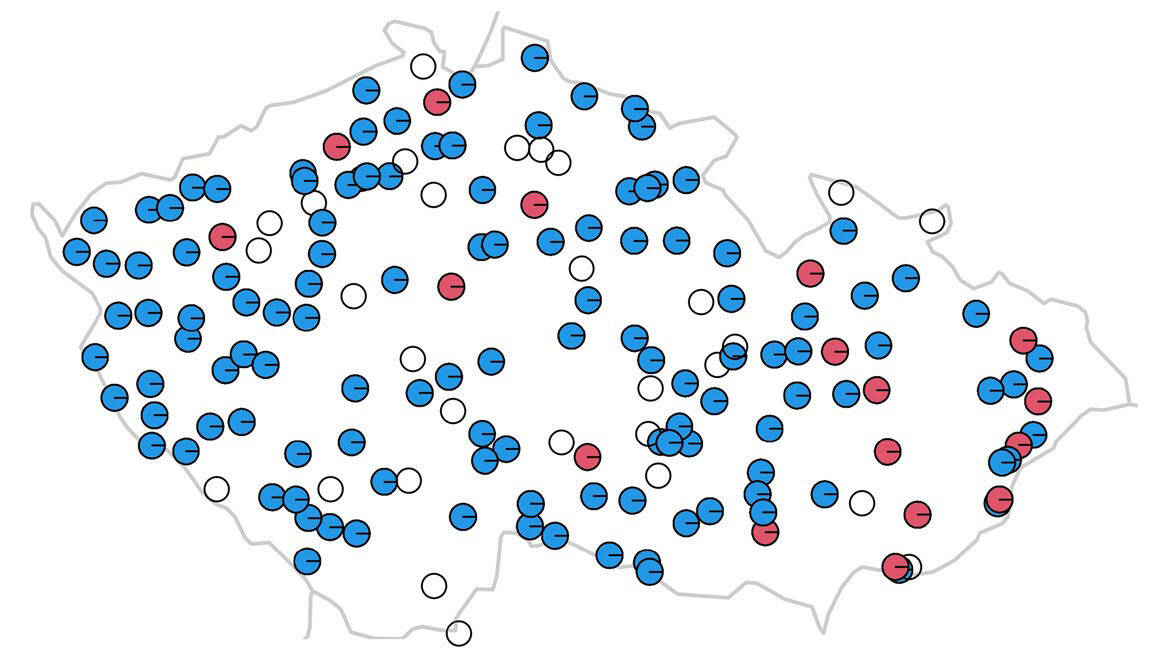
Obr. 6: Mapa rozšíření diploidních (červeně) a tetraploidních (modře) cytotypů chrastavce rolního (Knautia arvensis) zjištěných pomocí průtokové cytometrie (prázdné kruhy jsou populace neměřené).
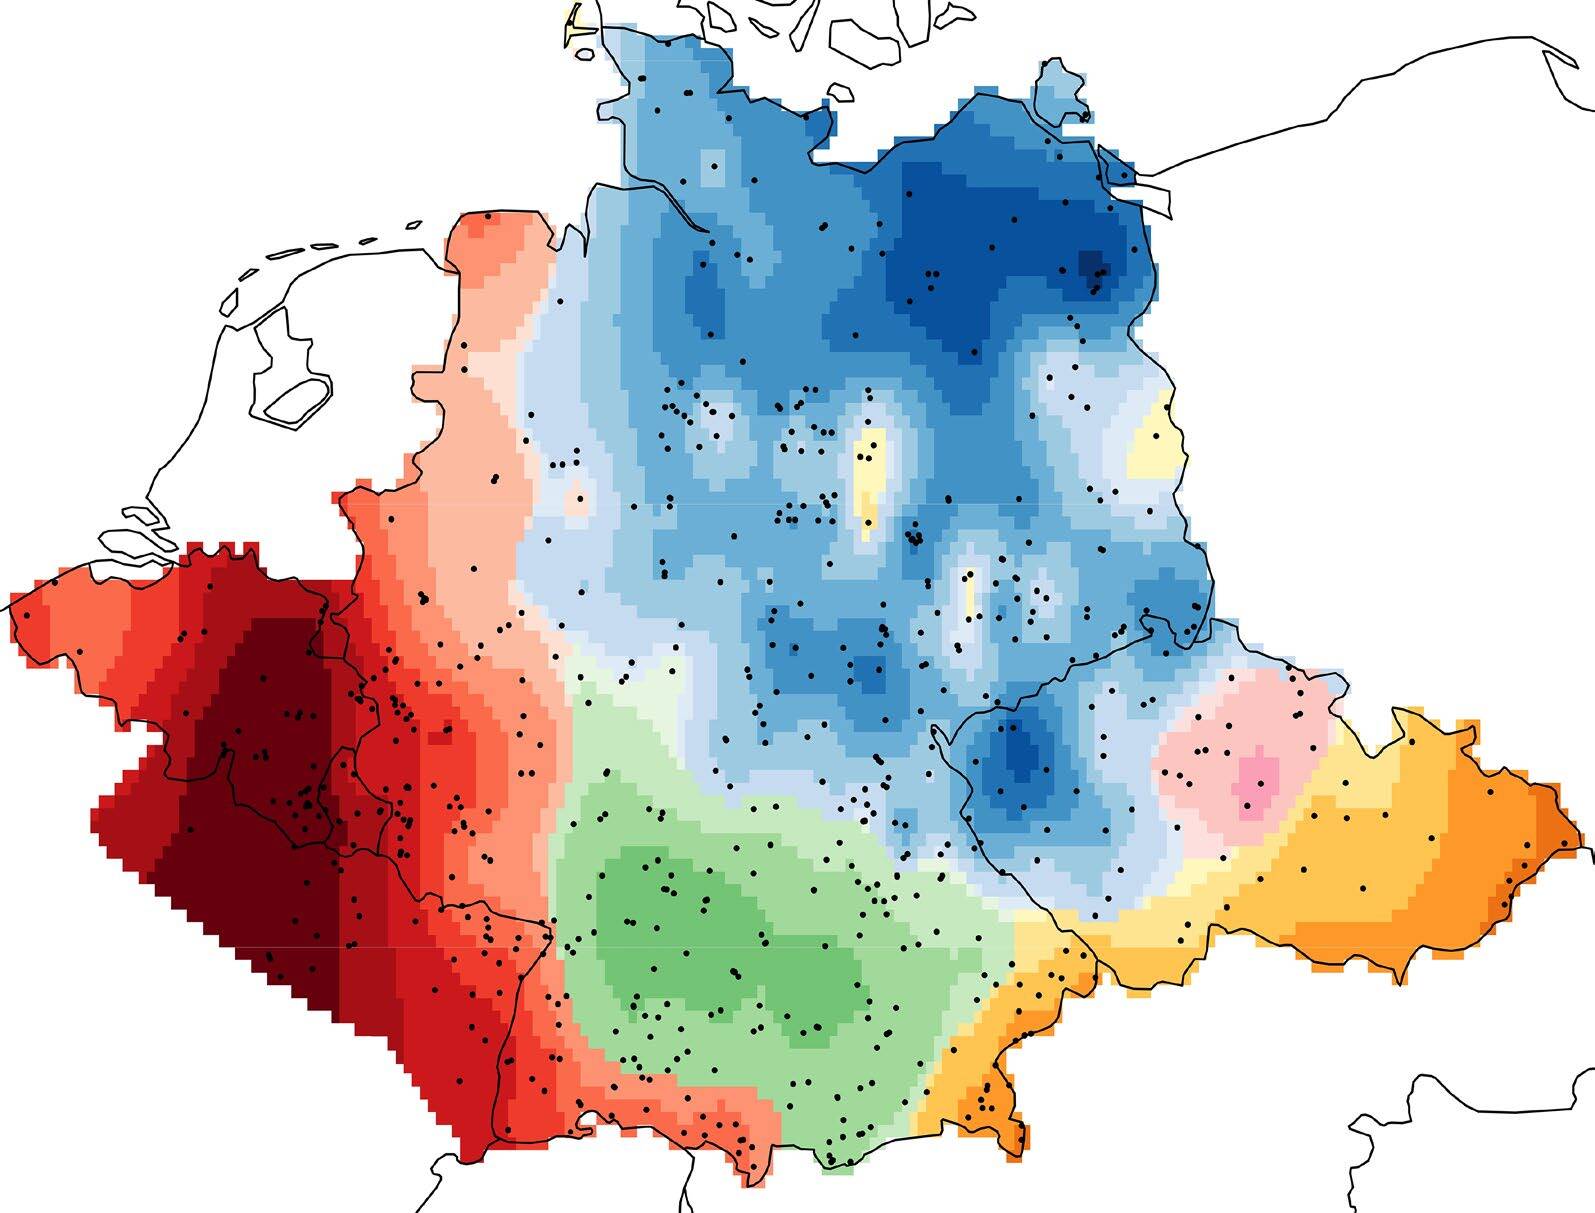
Obr. 7: Mapa genetické variability svízele bílého (pro 5 skupin) po sjednocení našich výsledků s výsledky předchozích projektů pro Německo, Belgii, Lucembursko a část Francie. Obrázek vytvořen s laskavým svolením následujících zahraničních autorů a spolupracovníků: Naturschutzsyndikat SICONA, Lucembursko (L. Siebenaler, T. Frankenberg, M. Oly, S. Schneider), spolupracovníci v Belgii a Francii (P. Bardin, J. Bonassi, Y. Coeckelberghs, M. Duval, S. Godefroid, T. Helminger, A. Holleville, M. Langlois, A. Léger, V. Lutz, T. Mahevas, Ch. Malgarini, E. Pierre, G. Seznec, Ch. Tinel, F. T‘jollyn, W. Van Landuyt, E. Weimann, M. Yoan) a RegioDiv Consortium.
Komplikovanější situace je u polyploidních komplexů s více běžně rozšířenými cytotypy. Jednotlivé cytotypy jsou obvykle na první pohled obtížně odlišitelné, ale biologicky a funkčně se často blíží spíše odděleným druhům, a je tak nutné je analyzovat odděleně. Příkladem může být chrastavec rolní (Obr. 6) s převažujícími tetraploidy a vtroušenými diploidními populacemi, které jsou běžnější na Moravě. V rámci těchto cytotypů je potom nutné genetickou strukturu studovat odděleně. Tyto analýzy momentálně probíhají.
Praktické aplikace
Tento výzkum ukazuje, že genetická diferenciace populací běžných lučních druhů rostlin se projevuje na větším prostorovém měřítku, než které vystihují v současnosti používané zdrojové regiony osiva. Potenciálně problematické tak mohou být přesuny osiva jen na delší vzdálenosti – u většiny druhů jde o vzdálenosti přesahující 100 km i více. Praxe lokálních regionálních osevních směsí má tedy dobrou oporu i v genetických datech a při jejich použití nehrozí zásadní nebezpečí genetické eroze. Zdá se však, že oblasti, v rámci kterých je přesun semen bezpečný, jsou větší než oblasti, pro které jsou v současnosti produkovány regionální osevní směsi. U směsí produkovaných komerčně ve větším množství záleží na konkrétních zahrnutých druzích, obecně se opět jeví jako důležité zamezení transportu osiva na delší vzdálenosti. Tyto předběžné výsledky jsou v souladu s předchozím zjištěním německého projektu, který popsal výrazné rozdíly mezi druhy a podle kterého většina druhů také vykazuje spíše pozvolné gradienty než ostré regionální hranice jednotlivých typů. Platí zde také obecný předpoklad, že genetická vzdálenost (odlišnost) roste s rostoucí geografickou vzdáleností. Vzhledem k většímu území ale německý výzkum většinou zachytil větší počet rozdílných typů v rámci druhu.
Vymezení doporučených zdrojových oblastí, které by odpovídaly genetické struktuře co nejvyššího počtu druhů, bude do určité míry možné až na základě konečných výsledků pro všechny druhy. Už teď je ale jasné, že vzhledem k mezidruhovým rozdílům je i přes některé obecné vzorce nutné brát v potaz, které konkrétní druhy jsou obsaženy v dané semenné směsi. Celkově je při tvorbě semenných směsí důležité se vyvarovat transportu semen na dlouhé vzdálenosti a použití lokálních zdrojů semen minimalizuje možné problémy. Absence ostrých hranic jednotlivých genetických typů naznačuje, že i použití materiálu na úrovni regionů velikosti např. krajů není u většiny druhů problematické.
Tento článek je výstupem projektu č. SS07010388 s názvem „Genetická variabilita běžných lučních rostlin v České republice jako podklad pro regionalizaci osevních směsí a trvale udržitelnou podporu druhové diverzity“ financovaného Technologickou agenturou ČR v rámci SS – Programu aplikovaného výzkumu, experimentálního vývoje a inovací v oblasti životního prostředí – Prostředí pro život, 04/2024 – 12/2026.
O projektu je možno získat další informace na našich webových stránkách
https://botany.natur.cuni.cz/louky/. ■
- - - -
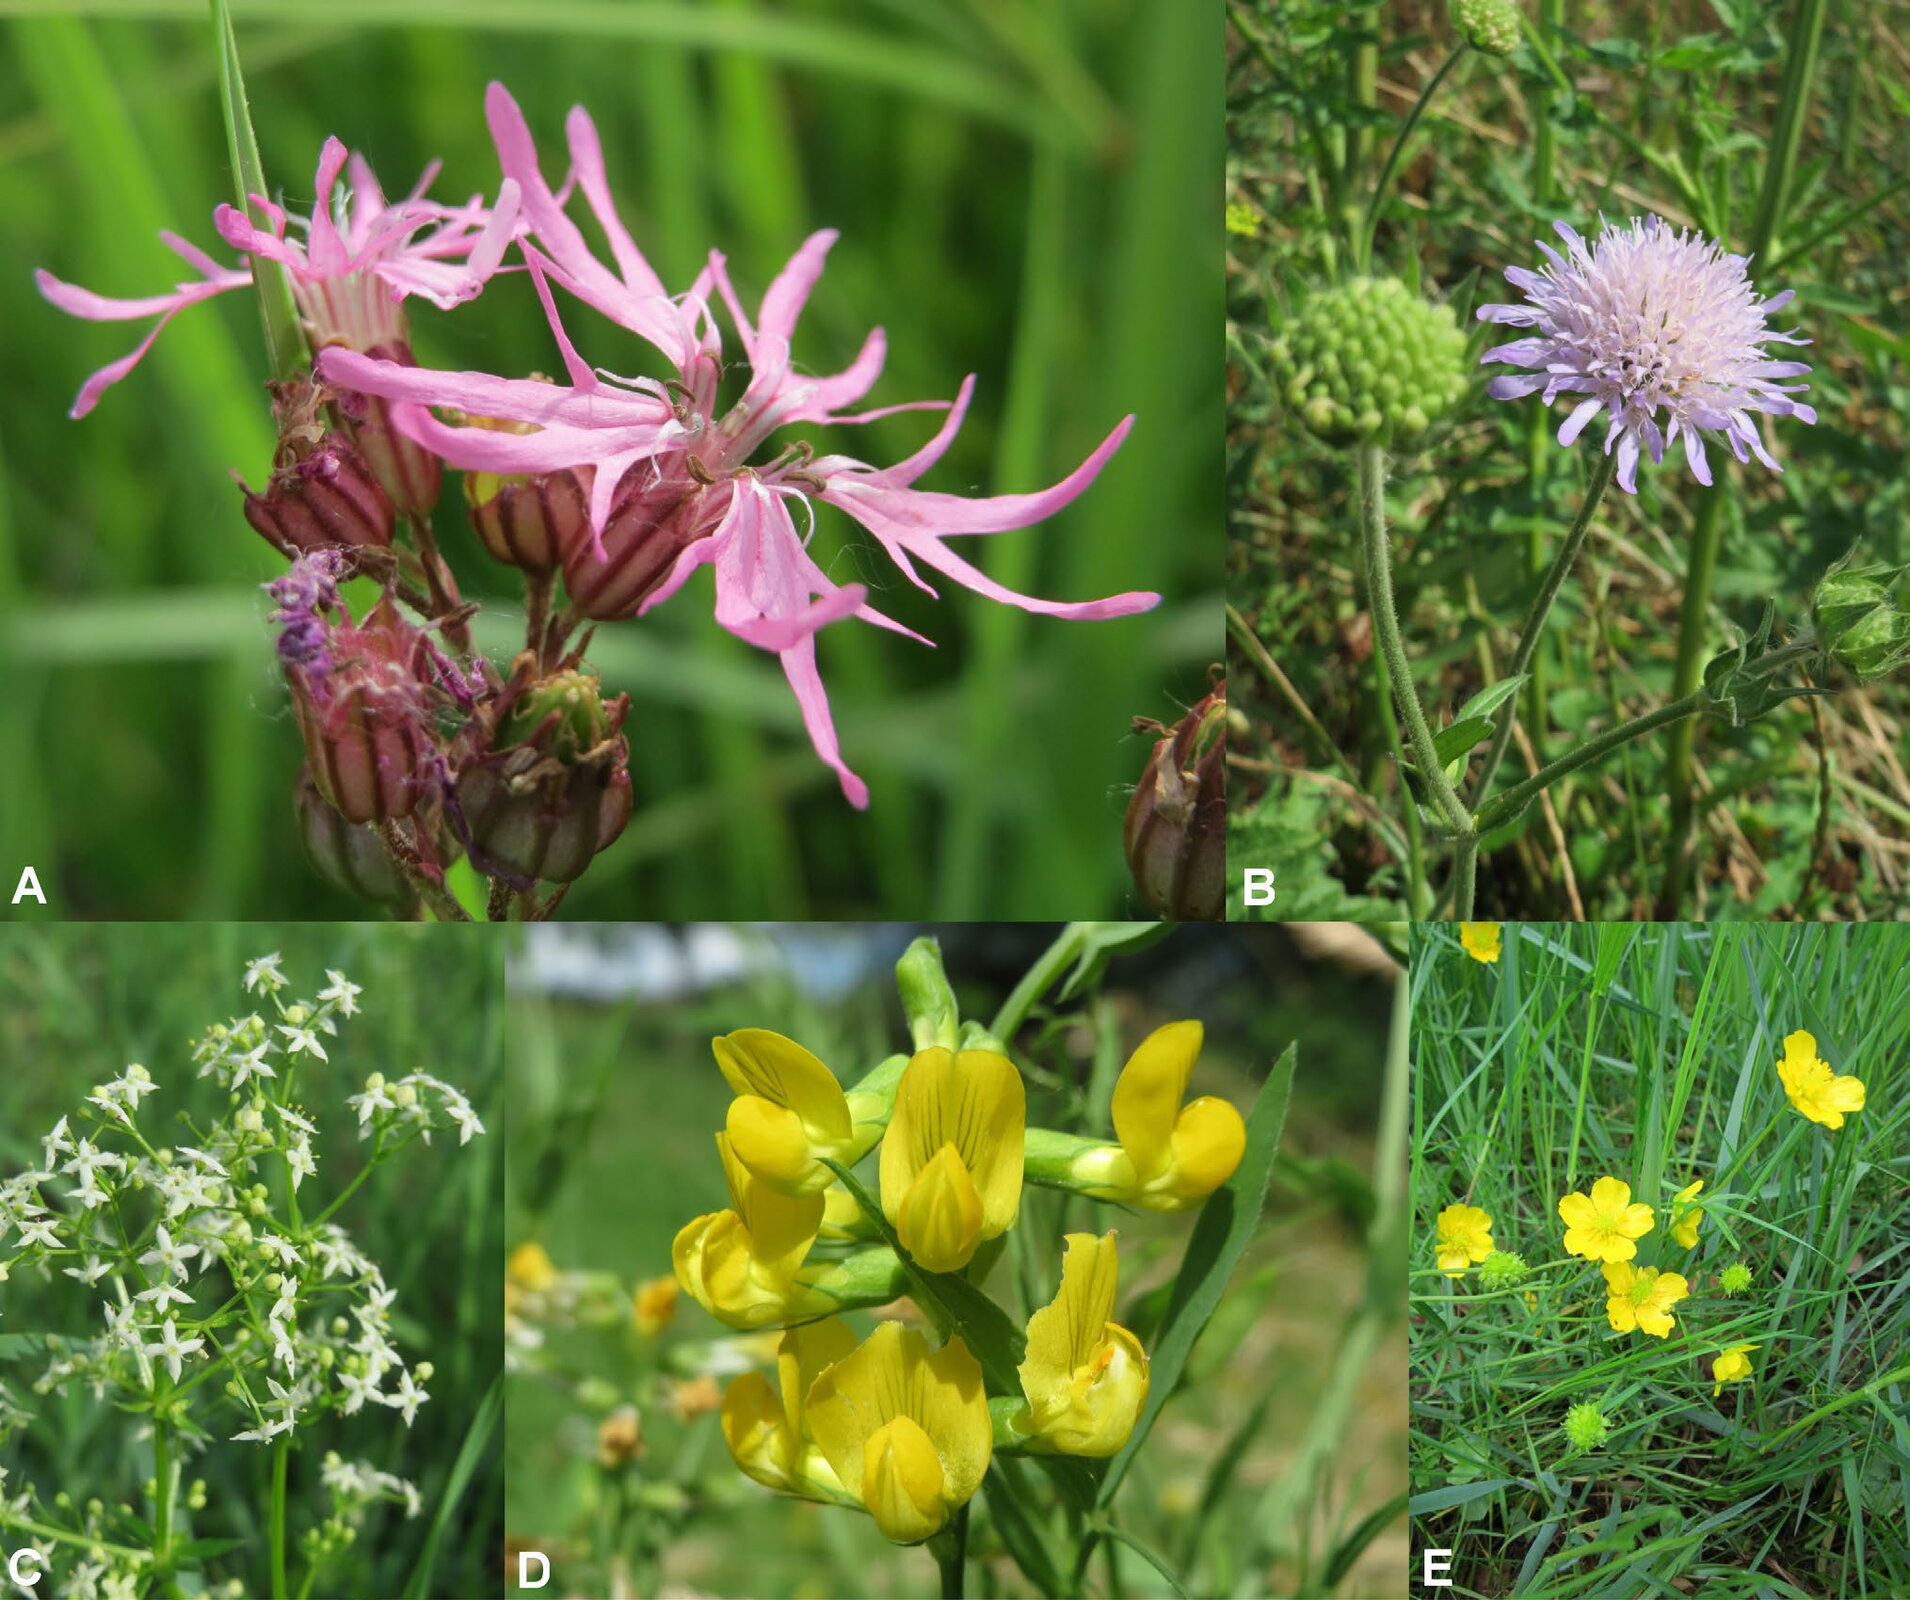
Úvodní foto: Obr. 1: Výběr druhů lučních bylin, pro které jsou prezentovány výsledky:
A – kohoutek luční (Lychnis flos-cuculi),
B – chrastavec rolní (Knautia arvensis agg.),
C – svízel povázka (Galium mollugo agg.),
D – hrachor luční (Lathyrus pratensis),
E – pryskyřník prudký (Ranunculus acris).
Foto AnRo0002, CC0 přes Wikimedia Commons.
- - - -
Literatura:
- Durka a kol. 2017 – Genetic differentiation within multiple common grassland plants supports seed transfer zones for ecological restoration, Journal of Applied Ecology
- Forgione a kol. 2026 – Restoring plant diversity in lowland grasslands: Efficacy of different seed addition and soil preparation methods, Agriculture, Ecosystems & Environment
- Klinkovská a kol. 2023 – Significant decline in habitat specialists in semi-dry grasslands over four decades, Biodiversity and Conservation
- Skálová a kol. 2025 – Není kopretina jako kopretina aneb Genetická diverzita lučních druhů a regionální osevní směsi, Živa 2025, 2: 64–68
- Wesche a kol. 2012 – Fifty years of change in Central European grassland vegetation: Large losses in species richness and animal-pollinated plants, Biological Conservation